「続・大いなる仮説 第一章 生命と種の起源」より一部抜粋
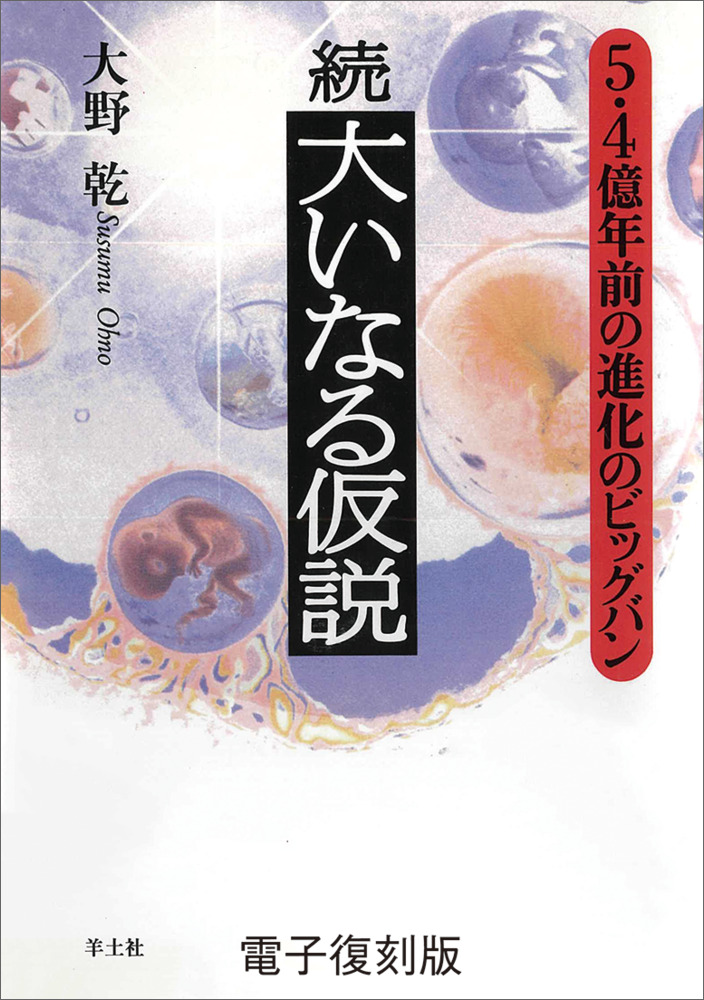
大野 乾/著
1996年に刊行された名著が待望の電子復刻!生命はなぜ太古に一度だけ自然発生したのか.多様な生物種はいかに生まれ,5.4億年前の「進化のビッグバン」はなぜ起きたのか.遺伝子重複による進化という独創的な理論を提唱した世界的遺伝学者・大野乾が,DNAとタンパク質に刻まれた生命の歴史を読み解く.生命と種の起源から,遺伝子の法則,脊椎動物ゲノムの変遷まで,大胆な仮説と自由な思索で進化の謎に迫る科学エッセイ.
鋳型は核酸だけかという疑問と、左旋か右旋か、アミノ酸と糖の光学的異性体の問題
なるほど、二対プリン・ピリミジン間の相補性のために、核酸の二鎖のそれぞれは鋳型となり、万代不変に自己増殖ができる。これが生命の根元であった。それでは、核酸以外には鋳型となりうる分子、または構造はないのだろうか? 私はほかにも幾つかあるように思っている。例えば、真核細胞の細胞質内に存在するミトコンドリアである。ミトコンドリアは、酸化リン酸化代謝の工場ではあるが、その中には環状DNAゲノムが存在し、複雑な二重の膜に仕切られている。マーゴリアス氏によると、細胞質内に寄生した原核生物由来ということであるが、その環状ゲノムはすでに退化し、数十の遺伝子しか持っておらず、従って、核遺伝子由来の蛋白に依存するところ甚大である。
細胞から何らかの方法で全ミトコンドリア(環状ゲノムも含めて)の除去に成功したと仮定しよう。この無ミトコンドリア細胞に数百コピーの環状ゲノムDNAを導入することに成功しただけでミトコンドリアは復元できるだろうか。私はできないと考える。もしそうであれば、ミトコンドリアの二重膜は、やはり鋳型の一種であると結論すべきであろう。
最近になって、科学の分野で低分子化合物の自己増殖による合成が注目の的になっている。日本では東京理科大学の硤合憲三氏が世界的な大活躍で注目の人となっている。低分子化合物と生命の誕生は光学異性体の関係でつながるのである。同じ化合物間に異性体(isomers)がありうる説明として、分子内中央近辺に位置するアルコール(OH)基を持った炭素原子に注目してみよう。分子のこの部分は、H・C・OHとも書けるし、また、OH・C・Hとも書ける。この選択が可能であるところに異性体存在の原因がある。異性体にはさまざまな種類があり、構造異性体などもあるが、生命の誕生と関係するのは蛋白構成素材としてのアミノ酸と、エネルギー原としての糖の光学異性体である。私の知るかぎりでは、光学異性体の存在を始めて証明したのはルイス・パスツールの酒石酸の結晶を偏光顕微鏡の下でl‐型とd‐型に分けた実験であった。dはdextroの頭文字で右旋であり、lはlevoの頭文字で左旋の意味である。ただし英語では、ヒトの右利きと左利きにちなんで、right-handednessとleft-handednessと呼び、handednessそのものをchiralityと呼ぶ。chirはギリシャ語で手の意味である。
ともあれ、この地球上の全生物が蛋白の合成用には、左旋アミノ酸しか使わず、燃焼材その他の用途に使う六炭糖、五炭糖はすべて右旋型である。地球上に住む全生物は持ちつ持たれつお互いに寄生し合って生きているわけであるから、全生物が揃って同じ光学異性体の選択を相互寄生のためにしなければならなかった理由はよくわかる。例えば、左旋ブドウ糖からできた澱粉は動物には消化不能である。ただし、必要性そのものは、いかにしてその必要性が満たされたかの説明にはならない。既述のミラー、ウレイ式の無機合成法によってできたアミノ酸および糖は、必ず右旋型と左旋型のほぼ等量の混合物であったであろう。その状態からいかにして左旋アミノ酸右旋糖の専用という状態にたどり着いたかが長年の謎であった。
ここで硤合憲三氏の最新の研究の紹介に移ろう。核酸が使う塩基のうち、大きいほうのアデニン、グアニンはプリンに属し、小さいほうのシトシン、チミン(DNA用)、ウラシル(RNA用)はピリミジンに属するが、そのピリミジンを含んだ第二アルコールの一種は自己触媒反応で自己増殖する。特定の異性体を鋳型として自己増殖させると、産物のほとんどが同じ異性体として出現した10)。こう考えると、地球創世記のアミノ酸、糖は自己触媒反応で生まれた可能性がでてくるが、この類の話は蛋白で終わるべきであろう。
ところで蛋白の話になると、狂牛病が話題となっている今日、〝プリオン〟の紹介をしなければなるまい。英国で狂牛病が流行した理由は、豪州から輸入した羊内臓物をウシの飼料に混ぜたからだという。ヒツジにはスクレイピーという伝染病が存在する。これがウシに伝染して海綿状脳炎を起こし狂牛となって死ぬわけであるが、死ぬ前に牛肉として売られると、ヒトにも伝染する可能性があるのではないかという疑いが生じてきた。若い人たちの間に海綿状脳炎を起こしてクロイツフェルト・ヤコブ病で死んだ人々がかなり英国に見つかったからだそうだ。摩訶不思議なことに、この種の伝染病の病原体は核酸を含まない蛋白そのものである。伝染源の蛋白は硬いβ板構造をしているが、宿主の体内に入ると宿主の脳内で特定の蛋白の変性をうながして自身と同じで硬いβ板構造を作らせ、アミロイド物質が蓄積して神経細胞を殺す結果となる。いかにしてごく少量の蛋白が宿主の多量の蛋白に自身に似た構造をとらせうるのかについては一際説明が存在しないが、案外こんなところに生命誕生の鍵が潜んでいるのかもしれない。
生命自然発生の第二の難関は、メッセンジャーRNA鋳型の延長であった
本当にRNAワールドが生命誕生の前奏曲として存在したのであれば、RNA塩基配列を蛋白のアミノ酸配列に翻訳するという生命の鍵である機構設立の準備がRNAワールド時代にすでに着々と進んでいたと考えざるをえない。翻訳の工場を提供するリボソームは構造が複雑すぎるから生命誕生後に生まれたとして、原始的な翻訳機構にも2種類の必須要因がある。第一はそれぞれが特定のアミノ酸と結合するtRNA群である。第二は、上記のtRNA群が翻訳の対照とするメッセンジャーRNAである。
第一については、RNAワールド時代、すでに末端にコドン・アンチコドン対を備えたヘア・ピン・ループRNAが、将来そのコドンがコードすべき特定アミノ酸と結合し始めていたらしいという新知見をすでに紹介した(図3)。現在非常に活発に研究が進んでいる分野であるから、上記の知見の普遍性については間もなく決着がつくことであろう。もし将来この普遍性が証明されれば、RNAワールドの時代にプロトtRNAがすでに存在していたこととなる。
ところで、プロトtRNA群に翻訳されるべきメッセンジャーRNAのほうはどうであろうか。プロトtRNAの場合は、パリンドローム性さえ内蔵していれば長さは二〇塩基長くらいでもこと足りた。ただし二〇塩基長のRNAは七アミノ酸残基よりなるヘプタペプチドもコードできない。つまり、メッセンジャーRNAとしては落第である。それでは、RNAワールド時代にRNAが先駆的に延長してメッセンジャーRNAと呼ばれるに相応しい長さになれる機構があったのであろうか。
ここで、私がパリンドロームと同様に大好きな話題、“繰り返し”が登場する。
生まれたての遺伝子は短い塩基配列の繰り返しでなければならなかった
ところで、濃縮でやっとできた単鎖RNA鋳型デカマーが、ペンタメア、例えばGCCAAの繰り返しであったとすると、どうであろうか。そのコピーは亜鉛イオンの存在上で容易にできて、まず下図のような二鎖のRNAになるだろう。

一〇対中、四対は弱いA:U結合であるから、真昼の烈日下で浅い海水が温まった時には、二つの単鎖に解離するであろう。日が落ちて水が冷たくなったらどうであろうか。両方が繰り返しであるから、第一コピーが第二コピーという具合に、不均等に接合する可能性が非常に強い(次頁の上図)。
接合した部分が、次のコピーのプライマーになるから、次のコピー作りは非常に簡単で、一躍、鋳型はデカマーからペンタデカマーに伸びる。つまり、一五〇%の伸長である。この自動伸長は繰り返し塩基配列の宿命であるから、理論的に無限である。従って、三五億年前に起こった唯一回の生命自然発生の前提条件は、一群の短い塩基の繰り返しでできた遺伝子の誕生であったということになる11)。
三で割れない単位の有効性
では、ペンタメアの繰り返しである遺伝子は、どんな蛋白を作るのであろうか。幸い、五は三で割れないから、その三倍、三つの連続コピーがペプチド周期性の単位となり、ペンタペプチドの周期性をペプチドに与える。ちなみに、一つ長い六塩基の繰り返しだと、六は三で割れるから、ジペプチドの周期性しかペプチドに与ええない(最下図参照)。

三で割れない単位を繰り返しに使うと、もう一つ都合のよいことがある。与えられた読み枠で単位を三つ違った読み枠ですでに翻訳しているから、この種類の遺伝子は三つの読み枠を全部使って同周期性のペプチドを指摘することができる。生命自然発生当時の、酵素ポリメラーゼに頼らない、亜鉛イオンだけに助けられた核酸複製の誤差率は非常に高く、一回一塩基対あたり10-2程度であると思われる。三つの読み枠を同時に使える不死身の遺伝子でないと、たちまち退化して無用のジャンクになってしまうであろう11)。また、この種の遺伝子に塩基置換が蓄積していくと、ある時点で、三つの読み枠が似て非なる機能の違ったペプチドを合成する可能性がでてくる。この特質も生命自然発生直後の迅速な進化に貢献したようである。
現在でも、日本で発見された特定の細菌が作るナイロン分解酵素は、既存の遺伝子が今まで使っていなかった読み枠を活用することによって、一躍合成に成功したものと思われる12)。
現存生物が稀に創造する遺伝子も短い塩基配列の繰り返しである事実
歴代に綿々と伝わる、核酸の塩基配列を唯一の情報源とするという前提で出発した生命は、創造を嫌わざるをえない。事実、本当の意味での上記のような遺伝子の創造は、生命誕生直後に起こったようで、その後の進化はもっぱら、遺伝子重複機構による、似て非なる遺伝子の蓄積に頼ってきたようである。遺伝子重複による進化というと、一風荘重に聞こえるが、悪く言えば既存の遺伝子の反復盗作である13)。それでも、ごく稀には、現存生物でもゲノムの今まで使っていなかったところから塩基配列を拾ってきて、本当の意味で新しい蛋白を創造することがある。この場合も新しく拾ってきた塩基配列は、三五億年以上前に誕生した最初の一群の遺伝子と同様、短い塩基配列の繰り返しであるという事実に言及しよう。
マラリア原虫が、蚊から宿主である脊椎動物に注入される時は、スポロゾイトという型をしている。この型の時の表面蛋白を環状スポロゾイト(circumspozoite)抗原と呼ぶ。面白いことに、ヒトのマラリア原虫であるplasmodium falciparumと、サルのマラリアの原虫であるplasmodium knowlesiとは、ラテン名が示すごとく同じ属でありながら、この抗原のアミノ酸配列には全然相同性がない。両種が独立に遺伝子を創造したからである。さらに両抗原とも、正確な、ただしそれぞれ違った周期性を示している。ヒトマラリア原虫は、Asn‐Ala‐Asn‐Proというテトラペプチドの周期性を示すが、サルマラリア原虫の抗原は、もっと長い一一のアミノ酸からなる周期性を示す14)。
老練の遺伝子がコードする蛋白にも繰り返しがたくさん残っているという数々の例
新しく生まれた蛋白は、なるほど短いペプチドの正確な繰り返しでできていたとしても、変性が進んで繰り返しの痕跡がなくなってしまうまではまともな機能は獲得できまい、と思われる読者がいるのではないかと思うので、ここでさにあらずという事実を明らかにしておこう。
われわれの痰がヌメヌメする理由は、ムチンという糖蛋白が含まれているからである。肺気管支で分泌されるムチンは空気とともに吸収された汚物を吸着して排泄するという大切な役割を果たす。ところでムチン1型の蛋白部は、一、二二五アミノ酸残基よりなるが、そのうち一四一番目から九四〇番目まではAla‐Pro‐Asp‐Thr‐Arg‐Pro‐Ala‐Pro‐Gly‐Ser‐Thr‐Ala‐Pro‐Pro‐Ala‐His‐Gly‐Vla‐Thr‐Serという二〇残基オリゴペプチドの正確な四〇コピーよりなっている。アミノ末端とカルボキシル末端だけに退化変性コピーが見られる。このほかにも繰り返しでできている蛋白は数多くあるが、特に注目すべきノッチと呼ばれる蛋白がある。この紹介でこの節の終わりとしよう。
ノッチ蛋白は巨大であり、細胞膜上に存在して受容体の役割を果たす。ショウジョウバエの場合、この遺伝子が機能喪失すると、発生時に余分な上皮細胞までが神経細胞に分化してしまい、上皮が欠乏するはめとなる。脊椎動物では、やはり余分な細胞が筋肉細胞へ分化しないように規制するのがその働きであるらしい。後に、パン・アニマリア(全動物共通)ゲノムという概念の紹介をするが、このノッチ遺伝子などは、約五億四、〇〇〇万年前のカンブリア初期に動物界のほとんど全門が同時出現した際に、すでにゲノムに含まれていたはずである。まさに老練の遺伝子の典型と見るべきであろう。それにもかかわらずノッチ蛋白の細胞外突出部には、まずEGF(三六残基長上皮細胞増殖因子)ドメインが三六コピー立て続けに並び、次にノッチライン一二ドメインの三コピーが続く。繰り返しは細胞質内部にも見られる。まずアンキリンドメインの六コピーがあり、続いてグルタミン残基の繰り返しがある15)。このグルタミン残基繰り返しの普遍性については第二章で再び触れる。特に面白いことは、EGF(上皮細胞増殖因子)そのものの受容体が、EGFドメインの繰り返しでできていることである。繰り返しは蛋白の宿命とでも言うべきか。
文献
5)Bridson, P. K. & Orgel, L. E. : Catalysis of accurate poly(C)directed synthesis of 3'-5'linked oligoguanylates by zinc ion. J. Mol. Biol. , 144: 567-577, 1980
6)Kruger, K. et al. : Self-splicing RNA: Autoexcision and autocyclization of the ribosomal intervenning sequences of Tetrahymena. Cell, 31: 147-157, 1982
7)Weiner, A. M. & Maizels, N. : tRNA-like structures tag the 3' end of genomic RNA molecules for replication: Implication for the origin of protein synthesis. Proc. Natl. Acad. Sci. USA, 84: 7383-7387, 1987
8)Shimizu, M. : Molecular basis for the genetic codes. J. Mol. Evol. , 18: 287-303, 1982
9)Yarus, M. : RNA-amino acid complex and the origin of the genetic codes. New Biol. , 3: 183-189, 1991
10)Soai, K. et al. : Asymmetric autocatalysis and amplification of enantiomeric excess of a chiral molecule. Nature, 376: 767-768, 1995
11)Ohno, S. : Repeats of base oligomers as the primordial coding sequences of the primeaval earth and their vestiges in modern genes. J. Mol. Evol. , 20: 313-321, 1984
12)Ohno, S. : The birth of a new enzyme from an alternative reading frame of the preexisted, internally repetitious coding sequence. Proc. Natl. Acad. Sci. USA, 81: 2421-2425, 1984
13)Ohno, S. : EVOLUTION BY GENE DUPLICATION. Springer-verlag, Heidelberg, 1970
14)Ozaki, L. S. , Svec, P. , Nussenzweig, R. S. , Nussenzweig, V. & Gordon, G. N. : Structure of Plasmodium knowlesi gene coding for the circumsporozoite protein. Cell, 34: 815-822, 1983
15)Rebay, I. , Fleming, R. T. et al. : Specifix FGF repeats of Notch meditate interactions with Delta and Serrate: implication for Notch as a multifunctional recepter. Cell, 67: 687-699, 1991
大野 乾/著
1996年に刊行された名著が待望の電子復刻!生命はなぜ太古に一度だけ自然発生したのか.多様な生物種はいかに生まれ,5.4億年前の「進化のビッグバン」はなぜ起きたのか.遺伝子重複による進化という独創的な理論を提唱した世界的遺伝学者・大野乾が,DNAとタンパク質に刻まれた生命の歴史を読み解く.生命と種の起源から,遺伝子の法則,脊椎動物ゲノムの変遷まで,大胆な仮説と自由な思索で進化の謎に迫る科学エッセイ.